从 Y1H、EMSA 到 ChIP、Dual-LUC,一篇看懂 TF→靶基因证据链

2026-10-26

来源/作者:普拉特泽生物-医学整体课题外包

      这篇适合谁看:第一次接触转录因子、启动子和顺式作用元件;在论文里经常看到 Y1H、EMSA、ChIP-qPCR、Dual-LUC,却不知道为什么要连续做四个实验;或者已经能认出实验名字,但结果图还是不会看、也分不清每个实验到底能证明到哪一步的人。

     qRT-PCR 和 RNA-seq。RNA-seq 可以帮我们从全局找到候选基因,qRT-PCR 可以帮我们验证某个基因在不同处理或材料中的转录水平是否发生变化。但真正进入“机制论文”以后,问题会继续往前走:如果我们怀疑一个转录因子 TF-A 会调控 Gene B,怎么把“我觉得它可能调控”变成“我有一条比较完整的证据链支持它调控”?

      这时就会出现四个非常常见的实验:Y1H、EMSA、ChIP-qPCR 和 Dual-LUC。它们看起来都在研究“TF 和启动子”,但其实问的并不是同一个问题。真正学会这一组实验,不是把四个缩写背下来,而是明白:前一个实验还回答不了什么,所以后面为什么还要再补一个实验。

      先给结论:Y1H 更像先问“这段 DNA 能不能被 TF 识别”;EMSA 再问“蛋白能不能在体外直接、特异地结合这段 DNA”;ChIP-qPCR 回到细胞染色质环境里问“TF 在体内是否富集于目标区域”;Dual-LUC 最后问“TF 出现以后,这个启动子的转录活性到底变强还是变弱”。
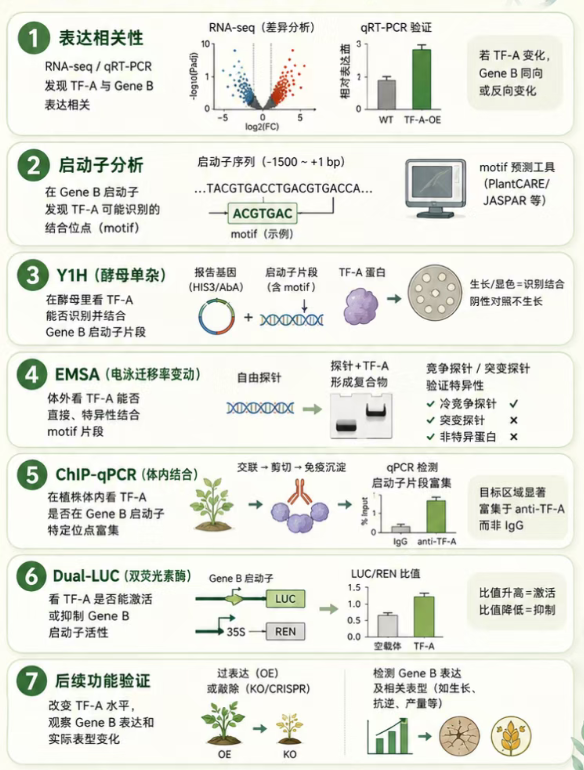
      假设我们研究水稻耐盐。RNA-seq 结果里发现一个转录因子 TF-A 在盐处理后明显上调,同时 Gene B 也发生了明显变化;qRT-PCR 又验证了这个趋势。再去分析 Gene B 的启动子,发现其中存在一个 TF-A 可能识别的 motif。到这里,我们可以提出一个很自然的假设:TF-A 会不会通过结合 Gene B 的启动子来调控 Gene B 的表达?
      但请注意,这时手里的证据仍然主要是“相关”和“预测”。TF-A 与 Gene B 一起变化,不代表 TF-A 就是 Gene B 的上游调控者;启动子里预测到了一个 motif,也不代表 TF-A 在真实细胞里一定会结合它。机制论文的工作,就是一点点把这些“可能”变成越来越具体、越来越难被其他解释替代的证据。
      小白最值得记住的一句话:机制论文的证据不是“一步到位”的。通常是相关性 → 靶位点预测 → DNA 识别/结合 → 体外直接结合 → 体内占据 → 转录活性变化 → 遗传学/表型功能验证。
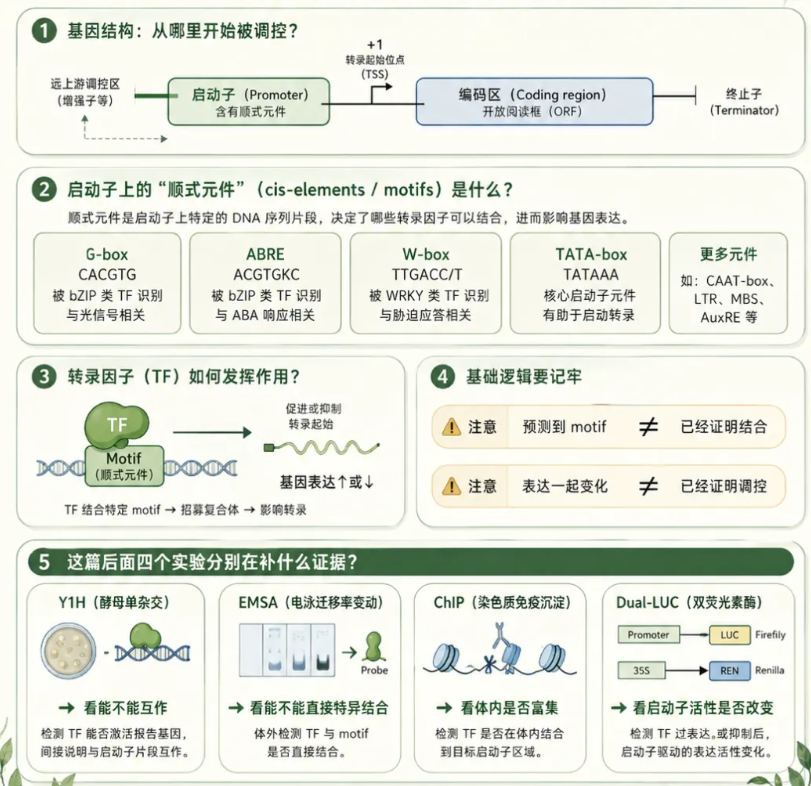
      转录因子(transcription factor,TF)可以先粗略理解成“调节基因开关强弱的一类蛋白”。它们通常不会随便黏在 DNA 的任何地方,而是更倾向识别某些特定的 DNA 序列。这些位于启动子或其他调控区域中的短序列,经常被叫作顺式作用元件(cis-element)或 motif。
      以一个最简化的基因为例,转录起始位点上游常有启动子(promoter),启动子里可能含有 G-box、ABRE、W-box 等不同元件。某些 bZIP、WRKY、MYB 等转录因子家族往往对特定 motif 有偏好。TF 结合这些调控区域后,可以招募其他蛋白复合体,促进或抑制转录。

      这里有两个极其常见的逻辑错误。第一,预测软件告诉你“这个启动子里有某个 motif”,这只是线索,不是实验性结合证据。第二,TF-A 和 Gene B 的表达量同时升高,也只是相关性,仍然不能证明 TF-A 直接调控 Gene B。

      今天有关于转录因子的实验介绍就先介绍到这里,若果您相关的医学科研实验外包的需求,欢迎随时咨询:18570028002哦~